Come funziona il corso
Un corso, due platee, due Aulaweb. La prima ora è servita a mettere in ordine la logistica di tutto l’anno.
Due corsi in uno
| GEO (Paleontologia, 64866) | NAT (Geologia e Paleontologia, 84450) | |
|---|---|---|
| CFU | 9 | 6 (il resto è il modulo di geologia) |
| Lezione | 54 ore | 34 ore |
| Esercitazione | 30 ore | 28 ore |
| Terreno | 14 ore, cioè due giorni (uno in comune con NAT) | 7 ore, un giorno |
| Fine lezioni | Fine maggio (storia della vita sulla Terra) | Inizio aprile (dopo i microscopi) |
L’insegnamento nasce per Scienze Geologiche; una parte viene mutuata da Naturali, che quindi hanno meno appuntamenti e meno slide. Le lezioni marcate GEO nel calendario valgono per i CFU solo dei geologi (i naturali possono comunque venire: lezioni aperte). Ci si iscrive all’Aulaweb del proprio corso e ci si cancella dall’altro: Aulaweb è il canale ufficiale per annunci, slide e materiali.
Fogli firma: a cosa servono
Non è un corso a frequenza obbligatoria e le firme non servono a controllare chi è bravo. Servono a tre cose pratiche:
- Sicurezza. Ai laboratori (tra 2–3 settimane) si accede solo con il corso sicurezza completo: 4 ore online + 8 ore in presenza. Le firme gli permettono di controllare chi è in regola.
- Turni al microscopio. Nel secondo semestre l’aula microscopi tiene 25 persone; su circa 60 iscritti, se seguono tutti servono tre turni, se seguono in cinque ne basta uno.
- Pullman per il terreno (aprile–maggio). Si prenota per chi frequenta davvero, non per gli iscritti: in passato si sono buttati 800 € per un pullman vuoto. Chi non è mai venuto non partecipa alle uscite.
Due fogli separati, uno NAT e uno GEO: firmare una volta sola, sul foglio giusto, e non per gli amici.
Orario, aula, emergenze
- Giovedì 9–11 e venerdì 14–16, aula 401 (C4.01). Schema fisso: il giovedì la teoria su un gruppo (es. trilobiti), il venerdì due ore di esercitazione sugli stessi fossili. Se salta un giorno, la pratica scivola alla settimana dopo.
- L’aula 401 permette di fare lezione anche con allerta gialla o arancione. Con allerta rossa la didattica chiude e si passa su Teams, codice canale 0n5ps9z.
- Slide già su Aulaweb, ma vengono aggiornate il giorno prima di ogni lezione (ogni anno riscrive metà o tre quarti del materiale): non scaricare tutto subito.
- Programma completo: corsi.unige.it/off.f/2025/ins/83496. Laboratorio di paleontologia: paleolab.unige.it, @paleolab.unige (ricerca, tesi, tirocini: utile fra due anni).
- Per dubbi: alzare la mano, mail, ufficio, Teams. È in ufficio tutti i giorni.
Il calendario (provvisorio) fino a gennaio
Lo carica negli annunci Aulaweb tra oggi e domani. Può cambiare: se l’escursione delle matricole di Geologia 1 (metà–fine ottobre, probabilmente mercoledì o giovedì) cade di giovedì, salta una data. Il 2 ottobre non c’è lezione (motivo non ricordato), l’11 dicembre nemmeno (congresso a Vienna).
| Date | Per chi | Argomento |
|---|---|---|
| 24–25 set | TUTTI | Introduzione · Paleontologia e tempo |
| 1 ott | TUTTI | Ambienti, paleoecologia, morfologia funzionale (2 ott: no lezione) |
| 8–9 ott | GEO | Sistematica ed evoluzione · Biozone e fossili guida (datare le rocce coi fossili) |
| 15–16 ott | TUTTI | Fossilizzazione e trasporto (tafonomia): prima esercitazione |
| 22–23 ott | TUTTI | Poriferi, archeociati, celenterati |
| 29–30 ott | TUTTI | Brachiopoda, Bryozoa |
| 5–6 nov | TUTTI | Mollusca 1: Polyplacophora, Bivalvia |
| 12–13 nov | TUTTI | Mollusca 2–3: nautiloidi, ammonoidi, coleoidi |
| 19–20 nov | TUTTI | Mollusca 3: cefalopodi · Mollusca 4: Gastropoda |
| 26–27 nov | TUTTI | Gastropoda · Tracce fossili |
| 3–4 dic | GEO / TUTTI | Tracce fossili in chiave paleoambientale (GEO) · esercitazione tracce |
| 10 dic | — | Da definire (11 dic: no lezione) |
| 17–18 dic | TUTTI | Arthropoda, Ostracoda |
| 7–8 gen | TUTTI | Echinodermata, Hemichordata (giovedì in AT02) |
| 14–15 gen | TUTTI | Piante (giovedì in AT02) |
Secondo semestre
- Pausa esami da metà gennaio a fine febbraio. Da marzo microscopi: 2 ore di teoria + turni in aula microscopi. In totale 8 ore di esercitazione, ma ciascuno ne fa due, scegliendo la propria slot in una tabella esterna (9–11, 11–13, 14–16). Chi si segna e non viene finisce in lista nera.
- Per NAT le “6 ore di paleontologia” a calendario del secondo semestre sono in realtà due: il venerdì è tenuto libero per le attività di terreno.
- Dopo i microscopi NAT ha finito (inizio aprile). GEO continua fino a fine maggio con la storia della vita sulla Terra: dall’Archeano all’Antropocene, intervallo per intervallo, con le mappe paleogeografiche (3 CFU in più).
- Uscite sul terreno ad aprile–maggio, quando il tempo lo permette. Una sarà nell’entroterra dietro Savona: una barriera corallina fossile a 500 m di quota, tra bosco e cinghiali.
La collezione didattica e il tutor
Tutti i fossili che si vedono a lezione (circa 1500) stanno in armadi al piano terra del Palazzo delle Scienze, nel corridoio verso l’amministrazione vicino agli ascensori (stanze CTI 08–09). Ogni armadio ha due colonne da 18 cassetti; dentro ci sono vaschette con un cartellino e il codice del fossile, e ogni vaschetta ha la sua posizione segnata sul vassoio. Le chiavi si chiedono in ufficio (I piano, o al tutor Luca, dottorando nel laboratorio accanto, presente a tutte le esercitazioni) scrivendo prima una mail per concordare il giorno. Si può passare mezza giornata o una giornata a ripassare con i cassetti aperti: è l’opzione più utile prima dell’esame. Da febbraio vale anche per i vetrini dei microfossili, nelle aule dedicate.
Ordine “quasi maniacale”: ogni fossile torna nella sua vaschetta e la vaschetta nel suo cassetto. Durante le esercitazioni controllare sempre che il codice sul fossile sia quello del cartellino e del cassetto, altrimenti ci si ritrova una trilobite nel cassetto delle spugne.
L’esame
Orale, tre fasi in sequenza, e una domanda che torna sempre: perché?
1. Prova di sbarramento al microscopio (dal 2° semestre in avanti è la prima domanda). Un vetrino: accendere il microscopio, mettere a fuoco con entrambi gli oculari, cambiare ingrandimento, cercare un microfossile a scelta e dire chi è, quanti milioni di anni ha, in che ambiente viveva. Tre minuti. Chi non sa mettere a fuoco o cambiare ingrandimento si alza e se ne va: la prova si perde quasi sempre per il microscopio, non per il fossile.
2. Campioni macroscopici: si parte da 3 (fino a 5 se uno non lo si riconosce), 5–10 minuti ciascuno. Per ogni campione: descrizione della morfologia, nome, modalità di fossilizzazione, biologia dell’organismo, ambiente deposizionale, età; per GEO anche l’inquadramento paleogeografico.
3. Domande di teoria sulle prime 5–6 lezioni (per tutti: evoluzione, genere, famiglia, omologia e analogia, processi di fossilizzazione); per GEO anche sulla parte finale, la storia della vita: data una mappa paleogeografica, riconoscere che è il Triassico e “mettere i soldatini nel posto giusto”.
Durata 20–40 minuti. Prima domanda tipica: “su che libro hai studiato?”, per calibrare le domande sul testo.
Il metodo del perché
Davanti a un sasso non si dice “è un corallo”. Si dice: vedo 1, 2, 3, 4, 5 cose, queste sono tipiche dei coralli, quindi è un corallo. Se non si vedono tutti i caratteri va bene fermarsi a “corallo o spugna, perché vedo due cose comuni a entrambi”. Il rischio di chi memorizza le foto è vedere la “foto 350” e dire trilobite quando ha davanti un riccio di mare. Poi la seconda domanda: perché è una trilobite? Non perché vivevano nel Paleozoico o nel mare, ma per la morfologia. Descrizione → nome → come si è fossilizzato → ambiente → distribuzione stratigrafica.
I fossili sono circa 1500 ma non vanno saputi genere e specie: si vedono 200–300 ammoniti per imparare i caratteri morfologici che identificano il gruppo, e all’esame se ne dà una.
Appelli e prenotazioni
- Appelli già inseriti: gennaio–febbraio (consiglio: andare ad assistere, per vedere come funziona), giugno, luglio, settembre; agosto forse.
- Prenotazione entro 5 giorni. La data dell’appello è solo l’appello: da lì l’esame può distribuirsi su più giorni, con elenchi mandati per mail 4–5 giorni prima e slot a scelta in base agli impegni.
- Quando ci si prenota, mail per fissare il ripasso sulla collezione.
Compitini (solo NAT, facoltativi)
Proposta non ufficiale, già provata l’anno scorso: a ogni esercitazione una scheda con crocette e spazio per disegnare i fossili (età, ambiente, modo di vita, fossilizzazione). Due compitini, uno nella pausa gennaio–febbraio e uno a fine corso: 3 fossili con la stessa scheda, nome ed età a mano, 3 domande aperte. Chi li fa, all’esame porta solo i 3 minuti di microscopio. L’anno scorso li hanno fatti 7 su 40, tutti con voto da 28 in su. Un compitino superato si mantiene anche se non si fa l’altro. Si organizza se c’è un gruppo abbastanza numeroso.
Come prepararsi
- Venire alle esercitazioni, dopo aver visto la teoria (le slide almeno).
- Scegliere e leggere almeno un libro di testo.
- Studiare sulla collezione didattica: appuntamento per le chiavi, aula studio, tutto in ordine sistematico.
- Ripassare i vetrini in sezione sottile nelle aule dedicate.
- Le slide sono immagini più che testo: bastano se si frequenta, non sostituiscono il libro per chi non frequenta.
Libri di testo
Nessuno è obbligatorio, uno vale l’altro; i PDF dell’80% sono su Aulaweb (cartella a tempo). Tutti sono in biblioteca e si possono sfogliare nel suo ufficio prima di scegliere.
| Testo | Note del docente |
|---|---|
| Benton & Harper, Introduction to Paleobiology and the Fossil Record | Il più completo, vivamente consigliato, in inglese. Copre l’80% del corso; molte immagini delle slide vengono da qui. Molto dettagliato nella parte iniziale (quattro capitoli di tafonomia contro le nostre due ore). |
| Società Paleontologica Italiana, Manuale di Paleontologia | In italiano, recente, molto sintetico: poche pagine per gruppo, l’essenziale. Copre il 60–70%. In biblioteca, non su Aulaweb. |
| Gradstein et al., Fossils and Earth Time (Elsevier, 2025) | Uscito da poco, sintetico, belle immagini, autori di peso. |
| Raffi–Serpagli · Allasinaz · Malaroda | Il “vintage” in italiano, anni ‘70: classificazione desueta, ma Allasinaz resta ottimo per gli invertebrati. Se non si trova altro vanno bene. |
| Armstrong & Brasier, Microfossils | Per la parte al microscopio: un po’ vecchiotto ma c’è tutto. |
| Taylor, Taylor & Krings, Paleobotany | Per le piante, consigliato soprattutto ai naturalisti. Lo detesta con tutto il cuore, ma è un bel libro sull’evoluzione delle piante. |
| Barsotti, Gnoli & Guerrini, Storia naturale del pianeta Terra (2 voll.) | GEO. In italiano e recente, ma divulgativo e poco scientifico, da scuola superiore: soluzione per chi fatica con l’inglese. |
| Torsvik & Cocks, Earth History and Palaeogeography | GEO. La fonte principale delle mappe paleogeografiche della parte finale del corso. |
| Gradstein et al., Geologic Time Scale 2020 (2 voll.) | GEO. “La Bibbia del geologo”: vol. 1 i metodi di studio del tempo, vol. 2 la storia della Terra dall’Archeano all’Antropocene. Aggiornato ogni 4–5 anni. |
Che cos’è la paleontologia
Definizioni dalle slide, e la mappa degli ambiti che il docente ha costruito per far vedere cosa c’è oltre questo corso.
Paleontologia: il ramo della scienza che studia la vita nel passato. Dal greco palaiós (antico) + óntos (essere) + lógos (studio).
Fossile: qualsiasi resto o traccia di animale o vegetale vissuto in epoche antecedenti all’attuale. Dal latino fossilis, “che si scava dalla terra”.
Body fossils: resti mineralizzati o scheletrici dell’organismo (conchiglia, osso, dente). Trace fossils: tracce dell’attività dell’organismo, senza parti dell’organismo stesso: impronte, tane, tunnel, ma anche le perforazioni (borings) fatte in un guscio altrui. Sono complementari: alcune informazioni le dà solo il corpo, altre solo la traccia. Una traccia è tale se l’organismo l’ha prodotta attivamente: l’impronta lasciata da una conchiglia che semplicemente giaceva sul fondo non è una traccia.
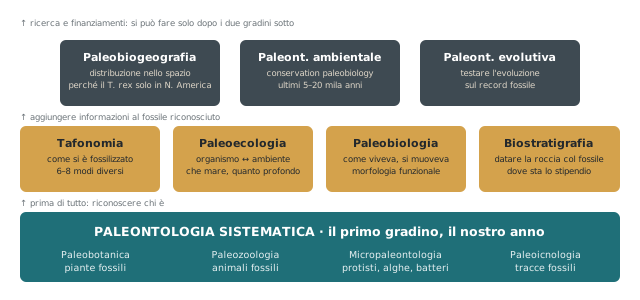
Due note per gradino
- Sistematica. È quello che fanno tutti i corsi base nel mondo, ed è lo “zoccolo duro” dell’anno. Per i naturalisti non è una ripetizione di zoologia: la diversità del record fossile è molto più ampia, e molti organismi (coralli e spugne del Paleozoico su tutti) non assomigliano a niente di quello che si è visto.
- Paleoecologia. Nel bosco basta guardarsi intorno; con un sasso e una foglia sopra bisogna capire se era bosco, palude, argine di fiume o roba finita in mare. Sul terreno la domanda non sarà “c’era il mare?” ma: che mare, quanto profondo, con onde o senza, quanto ossigeno, quanta luce. Coralli ramosi rotti e coralli massicci interi raccontano l’energia dell’ambiente. Le domande che un biologo marino risolve con maschera e computer da polso, qui vanno ricostruite.
- Paleobiologia. Come si riproduceva il T. rex, come facevano la muta le trilobiti, come nuotavano. Parte dalla morfologia funzionale.
- Biostratigrafia. Il grosso dei paleontologi che lavorano fa questo. Servono organismi con evoluzione rapida (cambiano specie ogni mezzo milione di anni), spesso piccoli: da qui la micropaleontologia. Un corallo dice “mare, poco profondo” ma resta uguale per 80 milioni di anni: non data. Il T. rex dice “Cretacico terminale, 65–66 Ma”: troppo poco preciso per essere un fossile guida (e non è del Giurassico: Jurassic Park è un titolo, non una datazione).
- Tafonomia. Un T. rex a 2000 m di profondità è improbabile: per arrivarci dovrebbe subire una catena di eventi (piena, spiaggia, tsunami, lago, fiume, canyon sottomarino) che difficilmente lascia un fossile. Sarà la prima lezione di sistematica, perché serve per tutti i fossili dell’anno.
- Paleobiogeografia. La biogeografia di Wallace (la linea di Wallace tra Bali e Lombok) applicata al passato: perché il T. rex solo in Nord America, perché in Italia solo Ciro.
- Paleontologia ambientale. Stessa metodologia del Giurassico applicata agli ultimi 5–20 mila anni: per capire se l’area protetta di Portofino funziona, si può leggere nel record paleontologico quanta posidonia c’era 5 mila anni fa, non solo quanta ne cresce oggi. Molti finanziamenti.
- Paleontologia evolutiva. I link mancanti, quando è avvenuta una diversificazione, quando sono comparsi i primi batteri: si testa sul record fossile. Più teorica, meno terreno.
Leggere un fossile: il gioco con le immagini
La seconda ora è stata un’esercitazione mascherata. Sei immagini, e da ognuna tirare fuori tutto quello che si può.
Il T. rex intero
Vertebrato (ha vertebre, ossa). Carnivoro (denti conici, appuntiti, seghettati). Predatore attivo, non saprofago: visione frontale, ma la visione frontale da sola non basta; arti posteriori possenti (anche l’elefante li ha, però il T. rex sta su due gambe e le deve usare per tenere ferma la preda). Dalle ossa si stima la biomeccanica: quanti chilonewton reggevano gli arti per un animale di un paio di tonnellate, quindi a che velocità andava, quindi se superava il triceratopo.
Ma “il corpo è fatto per muoversi bene” è un’osservazione viziata dall’immagine: la ricostruzione l’abbiamo fatta noi. Fino a 40–50 anni fa il T. rex stava in piedi come Godzilla, con la coda appoggiata a terra: provate a farlo correre così. Cosa ha cambiato le ricostruzioni sono state le tracce fossili: negli anni ‘40–50 l’industria petrolifera ha finanziato l’icnologia (le tracce servono a ricostruire i reservoir) e si sono studiate migliaia di piste di grandi vertebrati. Camminate, corse, di tutto: mai un’impronta di coda, che invece lasciano varani, iguane e perfino le tartarughe sulla sabbia. Quindi la coda non toccava terra. Da lì la coda si è sollevata in tutti i musei, i chilonewton sono cambiati, il bacino pure, e finalmente il T. rex può correre. Body fossils e trace fossils sono complementari: la biomeccanica dal solo scheletro non ci sarebbe mai arrivata.
Il dente isolato
Se dal frammento riconosco l’organismo, è come avere l’organismo intero: dietro quel dente c’era tutto il T. rex, e posso rifare lo stesso ragionamento. Cambia solo la tafonomia: perché c’è il dente e non il resto? Attenzione al contesto biologico: un dente di squalo isolato è normale (gli squali ne perdono in continuazione, non serve immaginare trasporti); un dente di T. rex senza mascella racconta invece un evento, una collutazione, un morso andato male.
L’impronta della conchiglia
Non c’è la conchiglia: c’è la sua impronta. Non è una traccia fossile (l’organismo non ha fatto nulla attivamente). Sequenza necessaria: il bivalve muore su un fondale morbido e vi lascia la forma; il sedimento litifica prendendo la morfologia esterna; poi il guscio si dissolve e la roccia no. Ma sono entrambi carbonato di calcio. La differenza è mineralogica: il guscio dei bivalvi è in gran parte aragonite, forma meno stabile della calcite, che con fluidi leggermente acidi si scioglie per prima. Quanta tafonomia in un’impronta.
Le orme del teropode
Un grande teropode (7–8 metri, tipo allosauro) che si muove in una direzione. Dalla distanza tra le impronte, con formule semplici, si stima l’altezza e se camminava o correva, con la cautela che il substrato (sabbia dura, fango) può alterare la lettura. Il substrato è pieno di ripple marks, le ondulazioni che il moto ondoso crea sulla sabbia: si vedono con maschera e pinne su qualunque fondale sabbioso ligure. Le orme tagliano i ripple, quindi vengono dopo: prima il mare, poi la marea si ritira e l’animale cammina sulla piana tidale (come in Bretagna o in Nord Francia; a Rimini in bassa marea la puzza di organismi in decomposizione dà l’idea). Perché ci va? Per mangiare: non le telline, ma chi viene a mangiare le telline, cioè la catena trofica di media taglia che si concentra sui banchi esposti. Solitario o gregario? Da una pista sola non si dice; con 5–8 piste parallele sì, e ci sono siti anche in Italia. Conservazione: il sedimento fine (sabbia fina, fango) che ricopre subito crea il velo che protegge la morfologia; se la copertura è più dura del substrato, erodendo resta il controcalco.
La vongola crivellata
Una valva sola di vongola, con vermetti bianchi incrostanti e centinaia di forellini. Il compito era ricostruire la storia dall’inizio (“Sherlock, parlate col vostro Watson”).
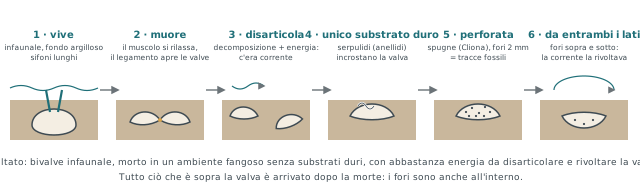
I caratteri che hanno sbloccato la storia
- Impronte muscolari (le “gocce”): dove si attaccano i muscoli adduttori, gli unici che chiudono le valve. Le vongole ne hanno due, cozze, ostriche e capesante una (guardare stasera negli spaghetti allo scoglio).
- Legamento: organico, dietro la cerniera, tende sempre ad aprire. Quando il muscolo si rilassa (morte, padella) il legamento vince e le valve si aprono; poi si decompone e le valve si disarticolano.
- Linea palleale: corre tra le due impronte muscolari e segna il limite del mantello. La sua rientranza, il seno palleale, è dove rientrano i sifoni (inalante ed esalante) quando l’animale si chiude. Il sifone è organico e non fossilizza, ma il seno sì: più profondo il seno, più lunghi i sifoni, più infossato l’organismo. Chi vive in acqua libera (cozze, ostriche) non ha bisogno di sifoni lunghi. Qui il seno era pronunciato: infaunale, quindi substrato molle.
- Serpulidi: anellidi che incrostano superfici carbonatiche, i vermetti bianchi delle cozze. Cliona: spugna perforante che si scava casa in gusci e substrati calcarei, fori perfettamente circolari di circa 2 mm (troppo regolari e piccoli per essere altro). Tanti tutti insieme significa che quella valva era l’unico substrato duro disponibile.
Il gasteropode predato
Storia triste: infanzia difficile e divorzio. Il foro circolare, uno solo di solito, cilindrico o leggermente conico, è opera di altri molluschi predatori (perfino cannibali) che perforano il guscio, uccidono e succhiano: lì è morto. Ma prima, sull’ornamentazione c’è una rottura a cuspidi con sotto una nuova mineralizzazione: un granchio ha rotto il guscio con le chele, l’animale si è ritirato nella columella, il granchio ha desistito e il gasteropode ha ricostruito il guscio. Un foro nella parte apicale, dove il corpo è sempre attaccato, non lascia scampo; su organismi grandi un foro nella columella può non essere letale. I fori richiedono ore di lavoro in condizioni non sicure: spesso si trovano fori incompleti, predatori che hanno rinunciato. In una collezione di gasteropodi, moderna o fossile, il 30–40% porta segni di predazione, attacco, salvezza, ricrescita: da qui partono molti lavori di paleoecologia, per 600 milioni di anni di interazioni.
Una valva di bivalve vista dall’interno con cerniera, legamento, due impronte muscolari, linea palleale e seno palleale, con accanto i sifoni. E la storia tafonomica della vongola in sei passaggi.
Da fare
- Verificare di essere iscritto solo all’Aulaweb di Paleontologia 64866 (GEO) e di aver firmato sul foglio GEO.
- Controllare lo stato del corso sicurezza (4 h online + 8 h in presenza): serve per i laboratori tra 2–3 settimane.
- Salvare il codice Teams 0n5ps9z per le allerte rosse.
- Scaricare le slide della lezione il giorno stesso, non tutte in anticipo.
- Scegliere un libro (Benton & Harper o il Manuale SPI) e guardarlo su Aulaweb prima che la cartella sparisca.
- Segnare 8–9 ottobre (solo GEO: sistematica, evoluzione, biozone, fossili guida) e il salto del 2 ottobre.
- Prima esercitazione vera: 15–16 ottobre, fossilizzazione e trasporto.
- Rispondere al ripasso: mail per le chiavi degli armadi quando serve, sempre con anticipo.
Prossima lezione
Venerdì 25 settembre, 14–16, aula 401: paleontologia e tempo.