Comunicazioni
- Argomento d’esame: la fossilizzazione “viene sempre trattata agli esami”: qualunque fossile venga dato, una delle domande è come si è fossilizzato quel resto.
- Domani, venerdì 16 ottobre, 14–16: esercitazione sulla fossilizzazione (vedi la sezione finale). Per i Naturali la lezione risulta tolta dal calendario: il prof non ne sapeva nulla e manda un messaggio per chiarire; per GEO il turno è confermato.
- 28 ottobre: uscita con i ragazzi di Geo “in un posto con una quantità furibonda di molluschi”: si faranno osservazioni sul trasporto.
- Calendario che il prof ha anticipato: cefalopodi verso metà novembre, trilobiti verso dicembre, piante nelle ultime lezioni (marzo-aprile). Le rocce con crinoidi (encriniti) si vedranno nel campo di maggio.
- Dalla settimana prossima, con la sistematica, i fogli dell’esercitazione avranno crocette diverse.
Tafonomia: che cos’è
Tafonomia (τάφος = seppellimento, νόμος = legge): la scienza che spiega le leggi del processo di seppellimento e di tutto quello che succede dalla morte dell’organismo al suo ritrovamento. Non studia le cause di morte. Definizione di Efremov (1940), dalla slide: lo studio della transizione, in tutti i suoi dettagli, dei resti animali dalla biosfera alla litosfera.
“Se ognuno di voi vuole un giorno fossilizzarsi, la prima cosa che deve fare è morire.” La seconda è essere seppellito il più rapidamente possibile.
Seppellire presto, o perdere pezzi
Il seppellimento rapido preserva già moltissimo. Un vertebrato lasciato scoperto viene smembrato e disarticolato quasi subito: le ossa si separano, e si perdono la geometria originaria e parte dei componenti.
- Gli scheletri interi di T. rex sono pochissimi; per la maggior parte dei grandi rettili del Mesozoico si conserva meno del 5% dello scheletro (esempio: Suchomimus). Da un pezzo di femore non si capisce se era un T. rex, né come vivesse.
- Oviraptor: chiamato “ladro di uova” perché trovato con gusci d’uova, finché altri resti hanno mostrato che le covava: uno dei migliori esempi di cure parentali.
- Gli organismi continentali, come Oviraptor, Spinosaurus, T. rex, sono i più difficili da ricostruire perché sul continente il seppellimento rapido è raro. L’ambiente che lo favorisce è il marino.
In aula “cure parentali… di tutto il paleozoico”: l’Oviraptor è un dinosauro del Cretacico superiore, quindi Mesozoico.
La catena è sempre la stessa: l’organismo muore, viene seppellito, non succedono fenomeni fisico-chimici che ne modifichino la struttura, e poi lo si trova. In mezzo può succedere di tutto, o niente.
Due casi estremi
A sinistra: Archaeopteryx lithographica (genere con la maiuscola, specie minuscola, tutto in corsivo). È in una teca blindata “che manco la Gioconda”. È un fossile eccellente perché conserva tutto:
- ossa tutte presenti e articolate;
- parte organica conservata come outline (contorno), comprese le piume;
- permette di collocarlo in un lineage evolutivo che porta agli uccelli di oggi: un “anello mancante”.
È del Titonico, l’ultimo piano del Giurassico superiore (Oxfordiano, Kimmeridgiano e Titonico sono gli ultimi tre). Dalle placche sternali, cioè dall’estensione delle placche ossee che sostenevano i tendini dei muscoli del volo, si deduce che poteva fare un po’ di volo battuto oltre a quello planato.
In aula “metà del giurassico” e “mesozoico inferiore”: il prof stesso lo colloca poco dopo nel Titonico, quindi Giurassico superiore.
A destra: nautiloidi ortoconici (cilindretti allungati, “parenti dei Nautilus”, visti più avanti con i cefalopodi). Il Nautilus ha un tubicino interno, il sifone, che sposta acqua e gas per il galleggiamento, come il giubbetto di chi fa subacquea. Dopo la morte i gusci galleggiano, poi perdono il gas, si riempiono d’acqua e affondano; dentro si può depositare sedimento (camere scure) o restare acqua poi mineralizzata (camere bianche); le correnti li allineano tutti nella stessa direzione.
Storia dell’Archaeopteryx: seppellito subito, nessuno ha toccato niente, la mineralogia è rimasta quella. Storia dei nautiloidi: spostati, orientati, rotti, poi seppelliti, in parte riempiti di sedimento, in parte mineralizzati con carbonato di calcio, con il guscio demineralizzato: la parte nera è roccia lucidata.
Con un fossile in mano ragionare sempre su che processo tafonomico ha subito.
Tanatocenosi, tafocenosi e biostratinomia
Termini che si trovano in tutti i libri di testo.
- Biocenosi: l’associazione viva. È roba dei Naturali: se è viva non interessa al paleontologo.
- Tanatocenosi (θάνατος = morte): l’associazione degli organismi morti nel posto, nella posizione e con le strutture con cui sono morti: la rappresentazione migliore possibile dell’organismo in vita. È rarissima ed è quella che fa fare “balzi da gigante” alla scienza. Esempio: l’Archaeopteryx.
- Tafocenosi (τάφος = seppellimento): ciò che si vede dopo che tutto ha modificato mineralogia, geometria e composizione dopo la morte.
- Biostratinomia: tutto ciò che succede tra la tanatocenosi e la tafocenosi.
Domanda tipica d’esame: “quali sono i processi biostratinomici che caratterizzano questo resto?” Si potrebbe dire anche “processi tafonomici”, ma il termine è in alcuni libri.
Esempio del prof: un dipinto d’epoca con i morti in posizione, contro il cimitero (tafocenosi): per passare da un caso all’altro sono servite decomposizione e trasporto, con altri vestiti e altra postura. Nelle collezioni didattiche si troveranno molto più spesso tafocenosi che tanatocenosi, anche se la collezione storica ha “un sacco di bei pezzi”.
Condizioni ideali di conservazione. Una medusa del Giurassico, nello stesso museo dell’Archaeopteryx: un’impronta nella sabbia. Annegata e adagiata sul fondale, si svuota del 99% di acqua e si appiattisce, e i cerchi “cipollari” intorno sono piccole ripple fatte dallo svuotamento. Servono ambienti di una calma assoluta, senza nemmeno un’ondicella. Per conservare anche parti non mineralizzate (piume, organi molli) bisogna:
- seppellire con un sedimento fine e argilloso, che impedisca la bioturbazione;
- non far circolare fluidi (niente rimescolamento chimico);
- non deformare né rompere la roccia con la tettonica in seguito.
L’immagine “sembra una radula” (la sagoma del fossile) non è una radula: non c’è nulla di mineralizzato, solo i granelli di sabbia che disegnano l’impronta della medusa.
Il trasporto
Trasporto (slide). Evidenze: disarticolazione, frammentazione, accumulo, sorting, imbricatura. Problemi: autoctonia (resto trovato nel posto in cui viveva) e alloctonia (resto trasportato). Cause: predatori, agenti fisici (onde del mare…). Dati utili: correnti unidirezionali o bidirezionali, correnti leggere o di alta energia.
Dimensione e velocità del flusso. Un grafico bilogaritmico mette sull’asse orizzontale la dimensione dell’oggetto (femore, cranio, guscio) e su quello verticale la velocità del flusso che lo sposta.
- Un oggetto di 1 mm resta fermo sul fondale finché la corrente non supera una certa soglia (nell’audio un valore di circa 7 cm/s (?)); poi viene trasportato come carico di fondo (rotola, saltella); a circa 20 cm/s (?) passa in sospensione.
- Più la velocità cala, più piccole sono le dimensioni dei clasti trasportati.
- Il fango fa eccezione: anche a velocità bassissime resta in sospensione.
Perché il fango non decanta. Densità e viscosità sono uguali per tutti, quindi non spiegano la differenza. I minerali argillosi (caolinite, smectite, illite…) sono piatti, con una superficie specifica molto alta, e restano in sospensione con pochissima energia. Per farlo decantare serve una velocità sotto 0,1 cm/s e almeno 24 ore di quiete (vasche di decantazione). Inoltre le scaglie si attaccano tra loro e il fango diventa difficilissimo da erodere: il fango sulle scarpe non va via con l’acqua del tubo, la sabbia sulla spiaggia sì.
In aula “le argille sono meno di 64 micrometri”: 62,5–64 µm è il limite tra sabbie e fango (silt più argilla); le argille vere e proprie sono sotto i 3,9 µm (vedi Geologia 1). I fossili di cui ci occupiamo stanno di solito dalle decine di micrometri in su, quindi fuori dal campo delle argille.
Dai clasti ai fossili. In una successione stratificata la variazione granulometrica dice che flusso ha depositato il materiale: ciottoli grandi, flusso potente; piccoli, flusso meno potente. Per i fossili si fa lo stesso, ma con una complicazione: non sono sfere, quindi bisogna conoscere il comportamento idrodinamico di ogni resto, ricavare un diametro equivalente e confrontarlo con la griglia.
Orientazione dei gusci.
- A energie molto basse i gusci stanno con la concavità verso l’alto.
- Con la velocità crescente (nell’audio tra 8 e 50 cm/s (?)) si rovesciano: concavità verso il basso (oltre i 10–15 cm/s (?)), poi si dispongono con l’umbone verso la corrente, infine nella posizione più idrodinamica per evitare il trasporto.
- Gasteropodi orientati in un solo verso indicano una corrente unidirezionale; orientati in due versi opposti indicano una corrente bidirezionale, come la marea montante e calante.
Bivalvi con le due valve unite. Alla morte i muscoli si rilassano e il legamento apre le valve: come le vongole che si aprono nella padella (“pop corn”). Un bivalve ritrovato con le valve chiuse è in genere infaunale: è morto già dentro il sedimento (vongole veraci, arselle vivono sotto l’interfaccia acqua-sedimento; cozze e ostriche sono epifaunali). Se fosse stato trasportato si sarebbe aperto e disarticolato, lasciando una valva sola: quindi non c’è stato trasporto.
Procedura: capire se un accumulo di fossili è stato trasportato
- Cerca le evidenze di trasporto: disarticolazione, frammentazione, sorting, imbricatura (fossili inclinati e impilati come tegole, di solito per una corrente blanda), orientazione comune.
- Guarda se i resti sono rotti, disarticolati, mal preservati: un “cimitero” di molluschi in una successione fangosa fa pensare a un accumulo.
- Confronta con quello che sta sopra e sotto: se i molluschi stanno solo in quell’intervallo e non nell’argilla intorno, sono stati portati da un altro ambiente. È come portare 50 persone da San Pier d’Arena a San Martino, oppure nel Sahara: nel secondo caso si vede subito che non erano del posto.
- Verifica se i resti in vita avevano una posizione incompatibile con quella trovata: non è la posizione di un organismo vivo.
- Dalle dimensioni e dall’orientazione ricava velocità e verso della corrente, e se era unidirezionale o bidirezionale.
Abrasione, biocorrosione e predazione
Abrasione e rottura. Fossili graffiati e rotti con un foro di rottura evidente: tra i responsabili ci sono i predatori, per esempio i decapodi (granchi), con le chele.
Apparati boccali. La lanterna di Aristotele dei ricci di mare si disarticola appena la guardi: se ne trovano pochi preservati, e quelle della collezione sono in scatolette (“non fate le maracas”). La radula dei molluschi è un nastro dentellato per mangiare. Il riccio di mare può scavare nel basalto: alle Hawaii ci sono successioni con i buchi dei ricci.
Il prof dice che i denti di riccio e radula sono di fosfato di calcio, apatite. In realtà i denti dei ricci sono di calcite magnesiaca e la radula dei molluschi è di chitina con ossidi di ferro o silice: l’apatite è tipica di conodonti e di denti e ossa dei vertebrati. Per l’esame vale la versione del prof.
Il pesce pappagallo ha un becco fatto per mangiare parti mineralizzate dure, come i calici dei coralli: mangiando carbonato di calcio lo riproduce come farina, uno dei grandi costituenti del carbonato micritico delle barriere coralline.
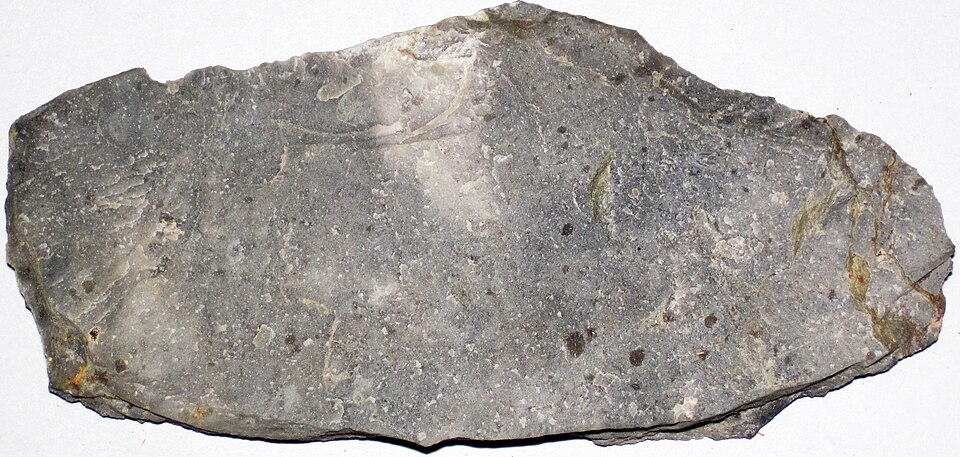
Biocorrosione. Organismi che bucano il substrato:
- ricci di mare che scavano;
- spugne del genere Cliona: lasciano buchi circolari; se la spugna è ancora viva sul guscio sembrano brufoli che si possono spremere;
- bivalvi perforanti, come i datteri di mare, che scavano nella roccia per farsi casa (il prof nomina anche i cannolicchi, che però scavano nella sabbia); vietati da raccogliere.
Nel Levante genovese, da Sturla fino a Zoagli, le spiagge ciottolose sono piene di tracce di questo tipo: i ciottoli sono calcari marnosi del Cretacico superiore colonizzati da organismi recenti: “due fossili in uno”. In collezione ce ne sono diversi, e capitano all’esame.
Predazione. Fori fatti da gasteropodi predatori su altri molluschi: la geometria del foro, cilindrica o conica, identifica la famiglia del predatore. Un foro incompiuto significa che il predatore è morto, ha rinunciato (servono 30–40 ore, circa tre giorni) o è stato mangiato a sua volta da un granchio mentre, avvolta la preda nel piede, la stava bucando con la radula.
Dissoluzione e ricristallizzazione
Uno dei processi più comuni che si vedranno quest’anno.
I fossili più comuni sono marini e, tra questi, quasi tutti hanno un guscio carbonatico, di aragonite o di calcite: interi gruppi sono dell’una o dell’altra.
| Mineralogia del guscio | Gruppi (dal prof) |
|---|---|
| Aragonite | la maggior parte dei bivalvi, le ammoniti |
| Calcite | coralli del Paleozoico, ricci di mare, ostriche, alcuni brachiopodi, alcuni trilobiti |
| Silicati e fosfati | difficilmente si sciolgono |
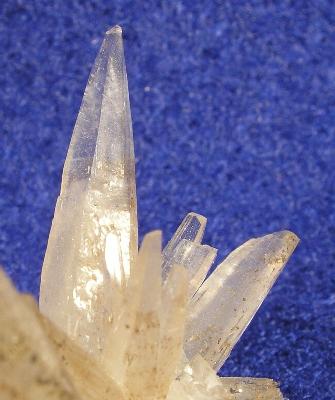
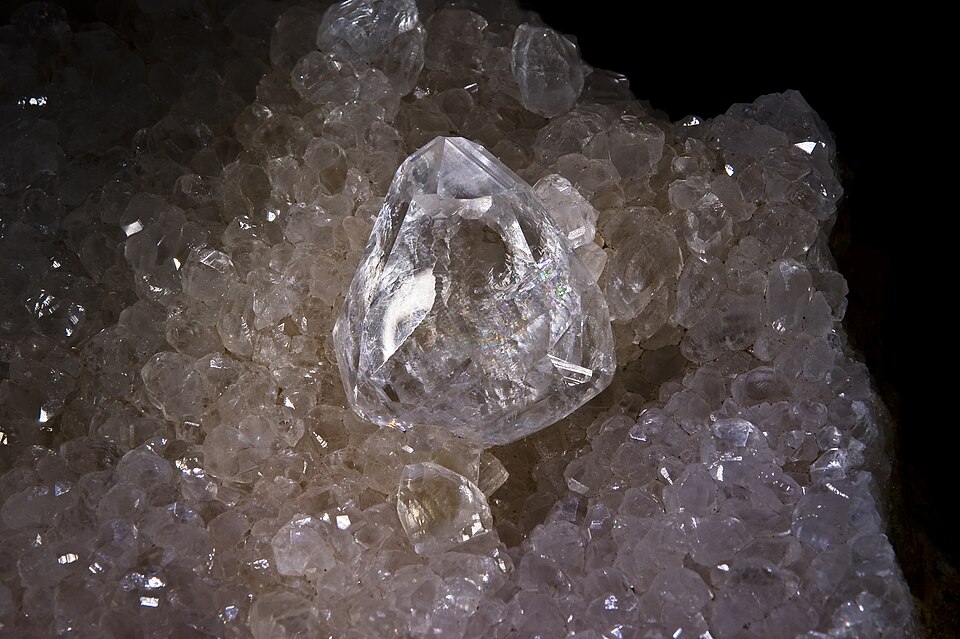
L’aragonite è poco resistente alla diagenesi: con il seppellimento il peso preme, l’acqua circola nella sabbia, e fluidi spesso leggermente acidi sciolgono i gusci in poche centinaia di anni lasciando un buco. Il buco può essere riempito dagli stessi fluidi, che riprecipitano carbonato di calcio non più come aragonite ma come altri minerali. La calcite è più stabile: scioglierla richiede un’impronta tafonomica più pesante.
Sparite: la “terza forma” di carbonato di calcio, in cristalli grandi e bianchi che riempiono i vuoti per precipitazione chimica. I riempimenti dopo la dissoluzione dell’aragonite sono sparitici.
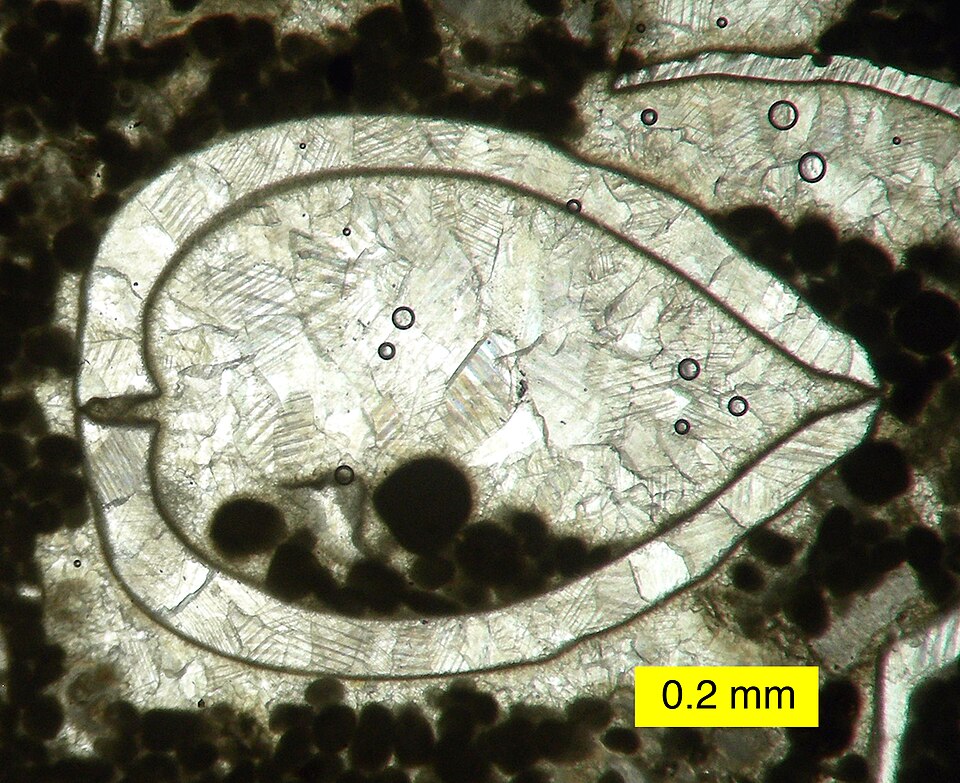
Esempio 1: il bivalve tagliato a metà. Dentro e fuori è un susseguirsi di cristalli di carbonato di calcio: del guscio resta solo la geometria, grazie a una linea nera, un velo di micrite organica deposto direttamente sul guscio poco dopo la morte.
Esempio 2: l’ammonite tagliata. Le camere sono connesse dal sifone; dentro non è entrato sedimento ma acqua, la materia organica si è decomposta, e l’acqua mineralizzata, ricca di ferro, magnesio e manganese, ha dato le colorazioni. Il guscio si è sciolto, ma le linee dei setti restano.
Procedura: ricostruire la storia tafonomica di un bivalve (domanda tipica d’esame)
- Valve ancora in connessione? Allora probabilmente era infaunale, morto nel sedimento.
- L’organismo muore, le valve restano leggermente beanti, dentro c’è acqua.
- La materia organica si decompone.
- La roccia indurisce: il sedimento deve litificare prima di sciogliere il guscio, altrimenti, sciolto il guscio, il fango molle collasserebbe.
- Poi il guscio di aragonite si scioglie.
- Il buco, con la forma esatta del bivalve, viene riempito di acqua e mineralizza (sparite). Resta la linea nera di micrite organica che disegna il contorno.
La sequenza degli eventi è fondamentale.
Piritizzazione, ammolite e carbonificazione
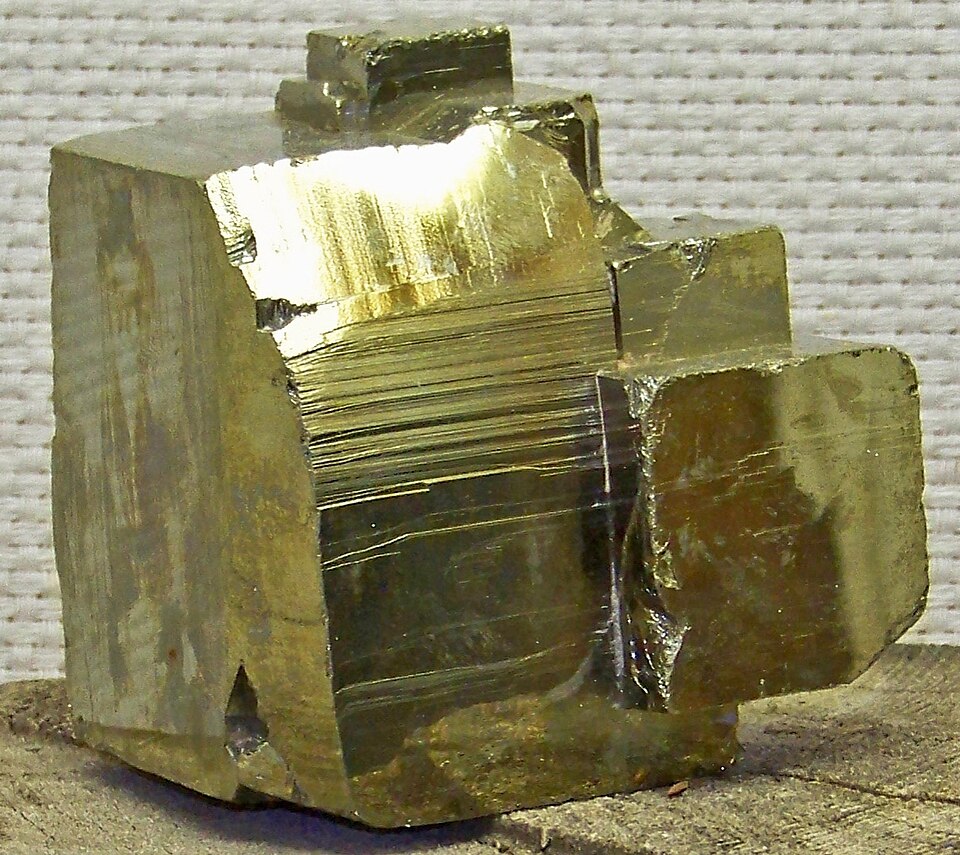
Piritizzazione. Un’ammonite piritizzata: la pirite (FeS2) è tipica della superficie dei fossili di aragonite, perché usa il ferro e lo zolfo presenti nei fondali marini. Si riconosce per i toni del giallo, spesso molto brillanti, e perché, essendo un solfuro di ferro, è molto pesante: l’ammonite pesa più del dovuto.
Ammolite. Un’ammonite con una mineralizzazione madreperlacea sopra il guscio: strati di madreperla che danno colorazioni belle. È l’unica gemma ricavata dai gusci delle ammoniti e viene commercializzata.
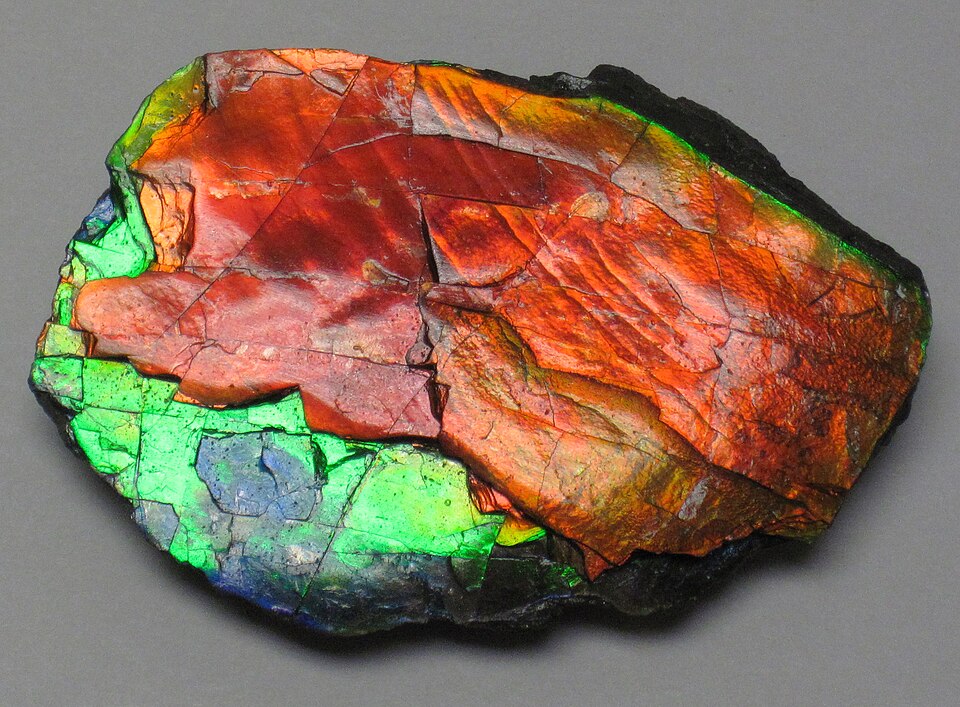
In aula la gemma “prende il nome di ammonite”: si chiama ammolite.
Carbonificazione.
Carbonificazione: la preservazione della materia organica trasformandola in carbone senza un aumento di temperatura. Diversa dalla carbonizzazione, che è bruciare (la carbonella).
Per ottenerla bisogna impedire la decomposizione: seppellire subito la pianta, senza contatto con l’ossigeno, quindi in ambiente anossico e in sedimenti molto fini (fanghi). Le rocce che si incontreranno (marzo-aprile) sono fanghi neri anossici ricchi di materia organica. Il Carbonifero è il periodo delle prime foreste, in ambienti paludosi: un tronco che cade in una palude viene chiuso dall’acqua e resta inalterato.
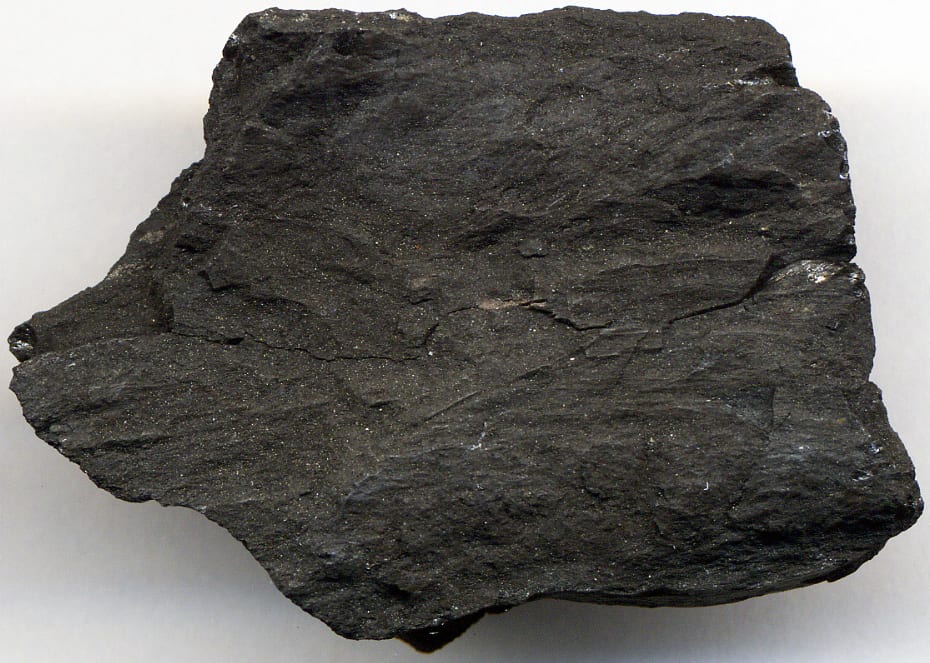
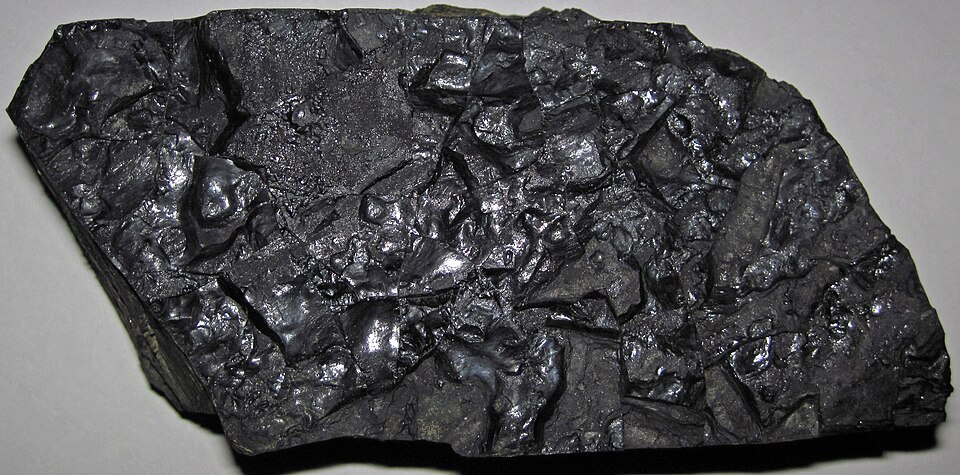
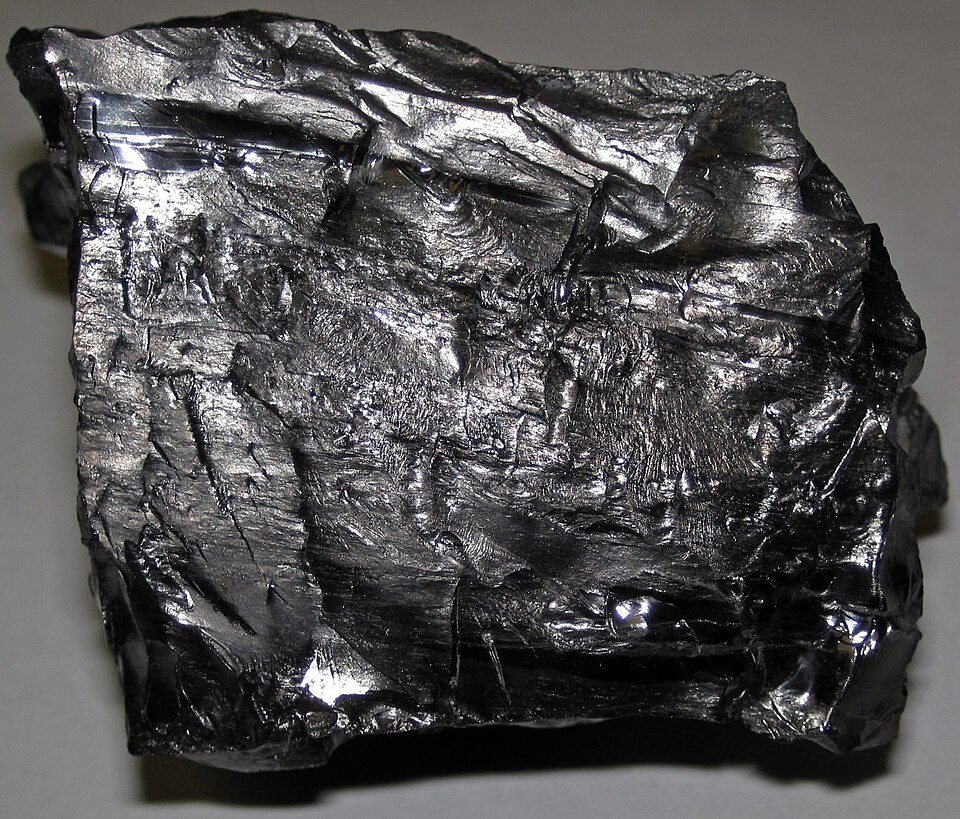
Foreste fossili in Liguria e Piemonte: in una zona, con preservazione quasi totale all’ossigeno ma non totale, restano solo parti delle foglie di grandi palme (i luoghi esatti sono poco chiari nell’audio (?)); in un’altra, più verso il Piemonte, sono tronchi silicizzati in rami fluviali meandriformi, preservati in ambiente continentale sotto la sabbia.
Permineralizzazione e sostituzione
Dalla slide, i due meccanismi di mineralizzazione:
- Per impregnazione (comune nei vertebrati): nelle microcavità delle ossa, una volta scomparsa la sostanza organica, precipitano sostanze minerali dai fluidi interstiziali. L’osso non si fragilizza e la microstruttura è conservata.
- Per sostituzione: calcitizzazione, silicizzazione, piritizzazione… La microstruttura può essere alterata, mentre la forma del resto organico non cambia.
La silicizzazione è molto dura: riflette bene la geometria originaria ma ne altera completamente la mineralogia, e resiste all’abrasione. Si può comprare una fetta di tronco silicizzato e farne il tavolo della cucina. Le foreste silicizzate più famose sono quelle del Nord America, in ambiente continentale. Anche le ossa dei vertebrati possono essere calcificate o silicizzate. La piritizzazione invece avviene in ambiente marino.
Nell’audio la permineralizzazione è descritta come un processo che “ricopre l’intero oggetto con un altro minerale”: è piuttosto un’incrostazione. Per la permineralizzazione vale la definizione della slide: impregnazione delle cavità.
Modelli e impronte
Succede soprattutto per gli organismi a guscio aragonitico: durante la diagenesi l’aragonite si scioglie e resta un buco, che può essere riempito o no. Spesso si ottiene la preservazione del buco, e la litificazione sia della parte esterna sia di quella interna:
- modello interno: il riempimento della cavità interna del guscio;
- impronta esterna: l’impronta sul sedimento della superficie esterna.
Esempio: un gasteropode visto solo come modello interno e impronta esterna. Una vongola vista come solo riempimento interno: era infaunale, è morta con le valve chiuse, il sedimento è entrato, tutto si è litificato, poi il guscio si è sciolto; il riempimento si è litificato quando il guscio c’era ancora, altrimenti non si avrebbe l’immagine perfetta dell’interno.
Gli studi tafonomici sono il primo passo in paleontologia applicata: i buchi lasciati dalla dissoluzione dell’aragonite aumentano la porosità di una roccia, importante per i reservoir di petrolio e gas e anche per lo stoccaggio della CO2 nella green economy. Argomenti che sembrano inutili hanno applicazioni industriali enormi.
Per ripassare prima dell’esame il prof consiglia le due immagini dei libri di testo (slide 25 e 26), che riassumono tutto quello che può succedere al fossile.
Distorsione, compattazione ed estensione
Processi dopo la litificazione, rari ma importanti.
Una trilobite stirata: bisogna prima seppellire l’organismo e indurirlo nella roccia; poi la roccia viene deformata da forze orogenetiche (faglie, pieghe, montagne che si alzano). Se la pressione è compressiva il fossile viene schiacciato, se è distensiva viene stirato. Un organismo allungato, come i cilindretti visti all’inizio, può essere spezzato in pezzi lungo la roccia.
Questi fossili sono le uniche evidenze per misurare la deformazione: si rimettono i pezzi uno accanto all’altro, e se prima occupavano 1 cm e ora stanno su 10 cm, l’estensione è stata di 10 volte la dimensione originaria.
Il prof dice che la prof.ssa Federico (Geologia 1, Modulo 1) “è innamorata di queste cose” e ne parlerà a lezione per mezz’ora con tutte le formule: vale la pena riprenderle lì.
Disarticolazione e paratassonomia
La disarticolazione può avvenire più volte nel processo: bivalvi, brachiopodi e soprattutto i crinoidi.
Crinoidi. Fatti da piccole placchette di carbonato di calcio unite da materia organica: alla morte si sbriciolano e lasciano un’enorme quantità di tasselli. Le rocce fatte quasi solo di questi tasselli si chiamano encriniti. Gli steli hanno simmetria pentamera: ogni placchetta ha forma di stella, e la roccia sembra un “cielo stellato” (le vedremo nel campo di maggio).
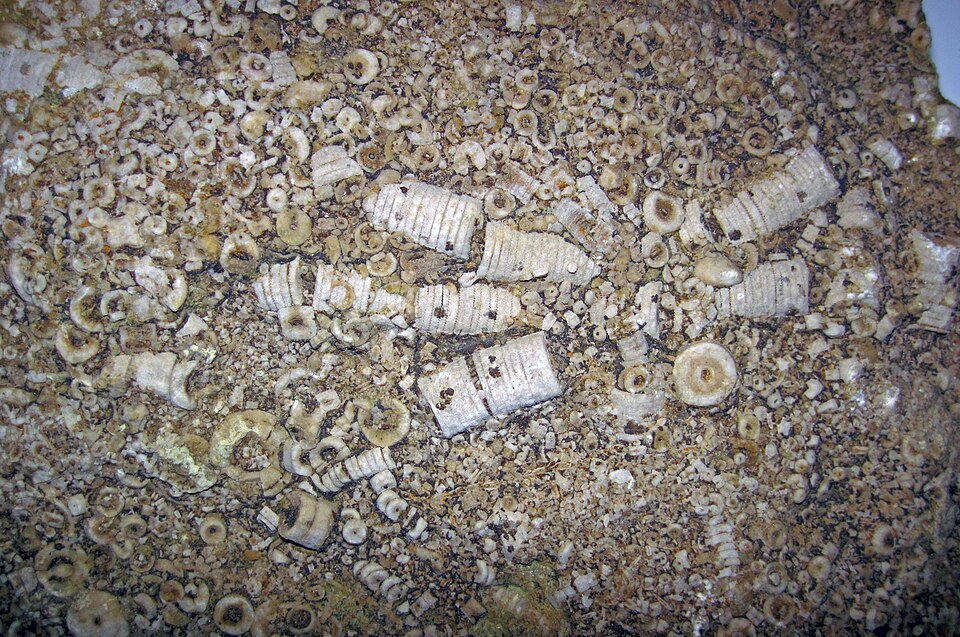
Paratassonomia: la presenza di un doppio sistema di catalogazione degli organismi. Si cerca di evitarla (“se do un nome a un oggetto, deve essere quello”), ma in paleontologia succede a causa della disarticolazione.
Esempi:
- Licopsidi del Carbonifero: alberi alti 25–35 m. Nel Settecento e nell’Ottocento, da resti diversi (pezzi cilindrici con buchini, oggetti neri allungati con strutture romboidali…) venivano descritti organismi diversi, ognuno con il suo nome; poi si è capito che erano lo stesso tronco con diversa geometria della corteccia: radici, rami, tronco.
- Conodonti: denti apatitici di un paio di millimetri, ognuno con un nome di genere e di specie, molto usati in biostratigrafia dal Cambriano alla fine del Triassico (migliaia di generi, decine di migliaia di specie). Negli anni ‘80 si è scoperto che appartengono a un animale vermiforme con 7–8 denti diversi nella bocca, ma si continua a dare il nome al dente, non al verme: ad esempio Neogondolella (?) cristini è il nome di un dente. Di vermi con l’apparato boccale intatto se ne sono trovati pochissimi. Per i geologi non è un problema: i conodonti sono tra i fossili più importanti per correlare i pozzi petroliferi, e in America centrale e settentrionale sono quelli che permettono le correlazioni.
Analisi quantitative. Con la disarticolazione stimare il numero di individui è impossibile: una scatola con 200 coste di orso delle caverne (Museo Doria; grotte di Toirano) non dice quanti orsi erano. Idem i denti di squalo, che costano 50 centesimi l’uno: uno squalo ne produce migliaia nella vita.
Preservazione eccezionale e Lagerstätten
I fossili eccezionali sono spesso “orrendi” ma contengono moltissime informazioni. Esempio: la fauna del Cambriano basale della Cina meridionale (Chengjiang): priapulidi con l’apparato digerente conservato come linea nera, gamberetti con le appendici in connessione, resti di brachiopodi, larve di artropodi e di graptoliti. “Ci aprono una finestra sul mondo”.
Lagerstätten (negli anni ‘70, studiosi tedeschi; la «ä» si pronuncia «e»: «lagerstetten»):
- Konzentrat-Lagerstätten: accumuli di resti disarticolati in concentrazioni eccezionali (per esempio livelli ad ossa). Meno spettacolari; mostrano un forte time averaging.
- Konservat-Lagerstätten: depositi con una preservazione eccezionale di organismi o tracce. Dalla slide, per esempio, il Burgess Shale (Canada, esplosione cambriana) e i calcari di Solnhofen (Archaeopteryx).
Come si ottiene la preservazione eccezionale: torbiere (Uomo di Tollund, Danimarca), mummificazione in ambienti aridi caldi o freddi per disidratazione (di breve durata geologica), congelamento (mammut).
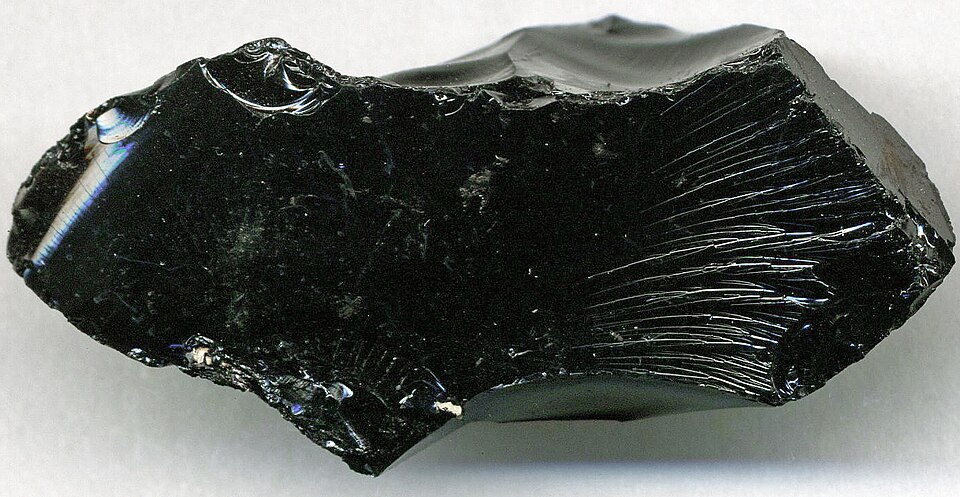
Asfalti di Rancho La Brea (California): sedimenti molto recenti, ricchi di materia organica, impostati su zone di risorgenza di petrolio, che fungevano da richiamo per l’intera catena trofica: piccoli organismi intrappolati, i medi che li volevano mangiare, i grandi predatori, tra cui il parente dello Smilodon (“Diego dell’era glaciale”). Nella scala nordamericana è addirittura un piano locale, il Rancholabreano. Il bitume solido, per esempio la gilsonite, è la stessa famiglia degli asfalti naturali:
Esercitazione di domani
Venerdì 16 ottobre, 14–16: “esercitazione libera”, solo sulla fossilizzazione. Dalla slide mostrata in aula (non è nelle dispense):
- Quando finite potete andare via; non ci sono pause; non si arriva all’ultimo: i cassetti sono circa 30 e non è previsto vederli tutti.
- Docente e tutor in aula: chiedete, descrivete, discutete.
- Il foglio serve a fissare le idee ed è utile per ripassare prima dell’esame. Non è valutato né da riconsegnare; ha tre riquadri per facciata, sei in tutto, e se ne prende uno solo.
Come è fatto il foglio. Per ogni fossile c’è un riquadro per il disegno e quattro domande:
- Che organismo è?
- Di quale materiale è fatto il fossile?
- Che processi tafonomici ha subito? Si sceglie tra: trasporto, abrasione, biocorrosione, predazione, dissoluzione, e poi rimineralizzazione, distorsione, disarticolazione, nulla.
- Posso riconoscere: modello interno, modello esterno, impronta, controimpronta.
Come si lavora. Sui tavoli ci sono vassoi di metallo con una o più vaschette e un fossile. Il fossile ha un codice, uguale a quello del cartellino e del vassoio: controllare che stia nel vassoio giusto. Non spostare i fossili: ci si avvicina al vassoio. Si sta in piedi, con giacche e zaini da parte, girando per l’aula. Tra i vassoi: disarticolazione, modelli, impronte, carbonificazione e uno di roba non diagenizzata, attuale e ben preservata.
Cosa guardare per ogni voce
Schema riassuntivo mio, ricavato dalla lezione: non è una slide del prof.
| Voce del foglio | Cosa cercare sul fossile |
|---|---|
| Organismo | forma generale: una o due valve? spira? raggi? Per ora si ragiona per grandi gruppi (bivalve, gasteropode, ammonite, brachiopode, corallo, riccio…); la sistematica arriva dalla prossima settimana |
| Materiale | aragonite (bivalvi, ammoniti), calcite (coralli paleozoici, ricci, ostriche, alcuni brachiopodi e trilobiti), silicati e fosfati. Segnali di sostituzione: pirite (giallo brillante, pesante), silice (durissima), sparite (cristalli bianchi) |
| Trasporto | disarticolazione, frammentazione, orientazione comune, imbricatura, sorting, accumulo; valve rovesciate |
| Abrasione | superficie graffiata o levigata, rotture con foro evidente (spesso predatori come i decapodi) |
| Biocorrosione | buchi circolari di spugne (Cliona), tracce di bivalvi perforanti o di ricci |
| Predazione | fori regolari, cilindrici o conici, di gasteropodi; fori incompiuti |
| Dissoluzione | guscio mancante, solo modello interno o impronta, riempimenti di sparite, linea nera di micrite organica |
| Rimineralizzazione | pirite (ammonite piritizzata), silicizzazione, calcitizzazione, ammolite |
| Distorsione | fossile stirato, schiacciato o spezzato in pezzi allineati |
| Disarticolazione | valve separate, elementi sparsi (per esempio ossicini di crinoidi) |
| Nulla | guscio originale ben conservato; è il caso del vassoio non diagenizzato |
| Modelli e impronte | modello interno: riempimento della cavità interna rimasto dopo la dissoluzione del guscio; impronta: il vuoto lasciato nella roccia dalla superficie esterna |
Nell’audio il prof ha parlato solo di modello interno e di impronta esterna. Sul foglio compaiono anche modello esterno e controimpronta. Nello schema della slide 26 (in inglese) compaiono natural mould, natural cast e internal cast. Qui il modello esterno va inteso come la copia in positivo della superficie esterna, ottenuta riempiendo il vuoto lasciato dal guscio, e la controimpronta come la faccia opposta a un’impronta. Come il prof usa esattamente i due termini non l’ho sentito: da chiedere domani in aula.
Da fare
- Venerdì 16, 14–16, esercitazione libera: portare matita, gomma e lente (se già ce l’hai); non serve vederli tutti, si può uscire quando si è finito.
- Prima di andare: rileggere in questo file Il trasporto, Dissoluzione e ricristallizzazione, Modelli e impronte e la tabella di sopra.
- Guardare con calma le due immagini dei libri di testo (slide 25 e 26): riassumono tutto quello che può succedere al fossile.
- Per ogni fossile ragionare in ordine: organismo → materiale → processi tafonomici → modelli e impronte, e scrivere perché, non solo segnare le crocette.
- Saper distinguere biocenosi, tanatocenosi, tafocenosi e biostratinomia, con un esempio ciascuno.
- Chiedere al prof o al tutor come usa modello esterno e controimpronta.
- Segnare l’uscita del 28 ottobre.